몸이 지방을 연료로 읽지 못하면, 운동은 체지방이 아닌 근육을 깎는 도구가 됩니다. 열심히 뛰어도 빠지지 않는 살과 멈추지 않는 식욕, 그 답은 대사 회로 안에 있습니다.
📌 핵심 요약
- 케톤 대사 회로가 꺼진 상태에서는 운동 중 지방이 에너지원으로 동원되지 못합니다. 지방산이 BHB(베타-하이드록시부티르산)로 전환되는 경로가 비활성화되면, 몸은 아무리 움직여도 지방 창고의 문을 열지 못합니다.
- 지방을 쓰지 못하는 몸은 근육의 BCAA(분지쇄 아미노산)를 분해해 에너지를 충당합니다. 운동을 할수록 근육이 줄고, 기초대사율이 낮아지며, 오히려 살이 찌기 쉬운 체질로 바뀌는 악순환이 시작됩니다.
- 탄수화물에 과도하게 의존하는 대사 패턴은 운동 직후 폭발적 식욕과 극심한 피로를 유발합니다. 운동 중 탄수화물 산화량이 높을수록 운동 후 보상적 과식이 커집니다.
- 운동 루틴을 바꾸기 전에, 내 몸의 '연료 스위치'가 제대로 작동하는지 점검하는 것이 먼저입니다. 내 상태를 파악하고, 식이·생활 습관 조정부터 시작해야 운동이 체지방 감소로 이어집니다.
🙋♂️운동 열심히 하는데, 왜 몸은 그대로일까요?
매일 아침 러닝머신 위에서 30분씩 뛰고, 주말마다 필라테스 수업을 듣고, 식단 앱에 칼로리를 기록합니다. 분명 6개월 전보다 운동량은 두 배로 늘었는데, 체중계 숫자는 요지부동이고 뱃살은 그대로입니다.
운동을 열심히 해도 눈에 띄는 변화를 느끼지 못한다면 운동 '방법'이 아니라, 몸이 에너지를 만드는 '회로' 자체에 문제가 있다는 것입니다.
우리 몸에는 두 가지 주요 연료 시스템이 있습니다. 하나는 탄수화물을 태우는 포도당 경로이고, 다른 하나는 지방을 케톤체로 바꿔 태우는 케톤 대사 경로입니다. 건강한 몸은 상황에 따라 이 두 경로를 자유롭게 오가는데, 이 능력을 ‘대사 유연성(Metabolic Flexibility)’이라 부릅니다.
대사 유연성이 높은 사람은 운동할 때 자연스럽게 지방을 꺼내 태울 수 있지만, 이 스위치가 굳어 버린 사람은 아무리 운동해도 몸이 포도당만 찾습니다. 그런데 포도당이 바닥나면 어떻게 될까요? 지방 대신 근육 속 아미노산을 분해해서 에너지를 만들어 냅니다.
그렇다면 이 '연료 스위치'는 왜 꺼지고, 꺼진 스위치는 몸속에서 어떤 도미노를 일으키는 걸까요?
🔍 몸이 지방을 태우지 못하면 무너지는 세 가지 도미노
운동해도 체지방이 줄지 않는 현상의 이면에는 세 가지 도미노가 연쇄적으로 작동하고 있습니다. 하나의 회로가 멈추면 다음 회로에 부하가 걸리고, 그 부하가 또 다른 회로를 무너뜨리는 구조입니다.
첫 번째 도미노, 케톤 대사 회로의 비활성화
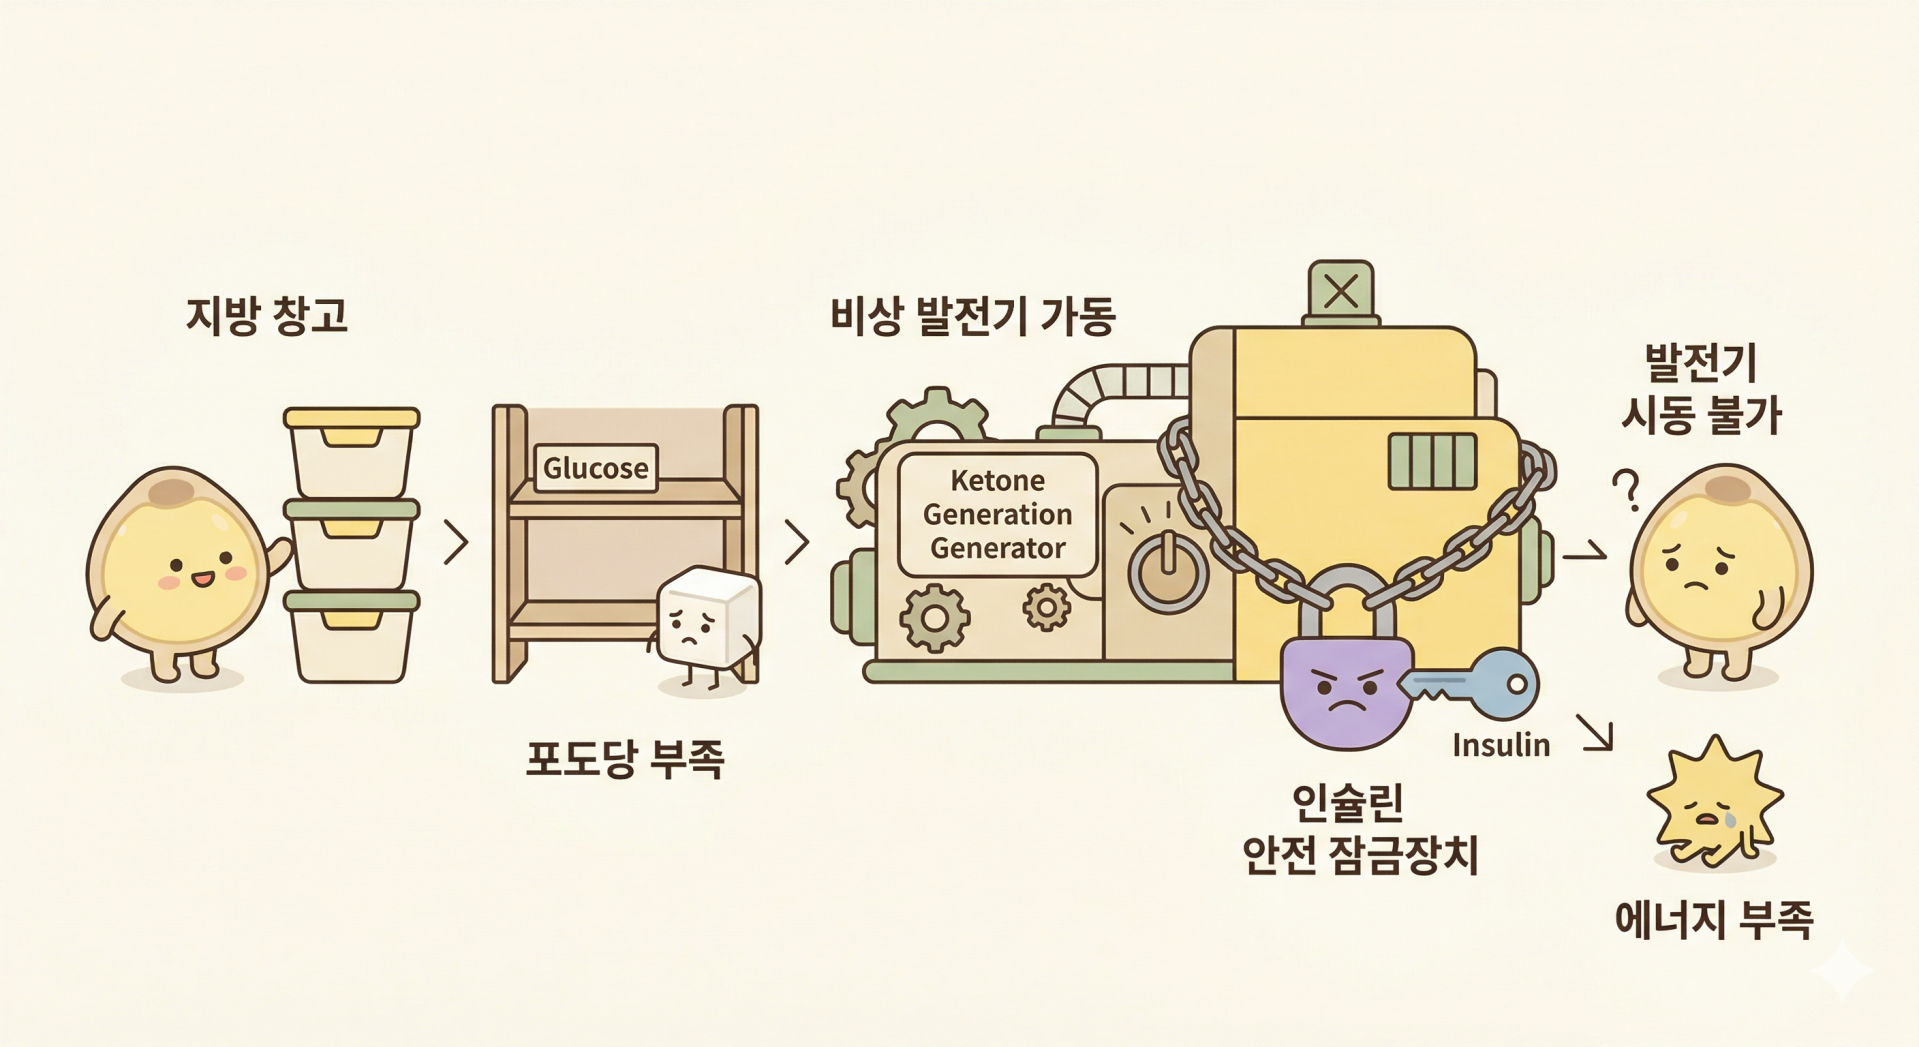
우리 몸에 저장된 체지방은 그 자체로는 근육이 쓸 수 없습니다. 지방이 실제 연료가 되려면 간에서 ‘지방산→아세틸-CoA→HMG→CoA→BHB(베타-하이드록시부티르산)’ 순서로 전환되는 ‘케톤 생성 경로(Ketogenesis)’를 거쳐야 합니다. 이 과정에서 핵심 효소인 HMGCS2(3-하이드록시-3-메틸글루타릴-CoA 합성효소 2)가 비상 발전기의 시동 키 역할을 합니다. HMGCS2는 인슐린에 의해 억제되기 때문에, 혈당과 인슐린이 지속적으로 높은 상태에서는 시동 키가 잠긴 채로 유지됩니다.
비유하자면, 케톤 대사 경로는 ‘지방 창고의 비상 발전기’와 같습니다. 정상적이라면 포도당이 부족해질 때 자동으로 발전기가 가동되어 지방을 전기(에너지)로 바꿔야 합니다. 그런데 인슐린이라는 ‘안전 잠금장치’가 항상 걸려 있으면, 아무리 포도당이 바닥나도 발전기의 시동이 걸리지 않습니다.
BHB는 단순한 에너지원을 넘어 세포 신호 전달, 유전자 발현 조절, 항산화 방어에까지 관여하는 다기능 대사체입니다. 여기에 더해, 2024년 '셀(Cell)'에 발표된 논문에서는 BHB의 전혀 새로운 역할이 밝혀졌습니다. CNDP2라는 효소가 BHB와 유리 아미노산을 결합시켜 BHB-아미노산이라는 새로운 대사체 군을 만들어 내며, 그 중 가장 풍부한 HB-Phe(BHB-페닐알라닌)가 시상하부와 뇌간 뉴런을 활성화하여 식욕을 억제하는 기능을 갖고 있음이 비만 마우스 모델에서 확인되었습니다. 같은 연구에서 인간 혈장에서도 BHB-아미노산과 CNDP2 활성이 보존되어 있음이 검증되었지만, 식욕 억제 효과의 인간 임상 데이터는 아직 확보되지 않은 초기 연구 단계입니다.¹
그럼에도 이 발견이 시사하는 바는 분명합니다. 케톤 대사가 정상적으로 작동하면 지방을 태우면서 동시에 '배부름 신호'까지 보내는 경로가 열리지만, 이 회로가 꺼져 있으면 지방은 그대로이고 식욕 브레이크도 풀려 버릴 수 있다는 것입니다.
두 번째 도미노, 근손실의 악순환
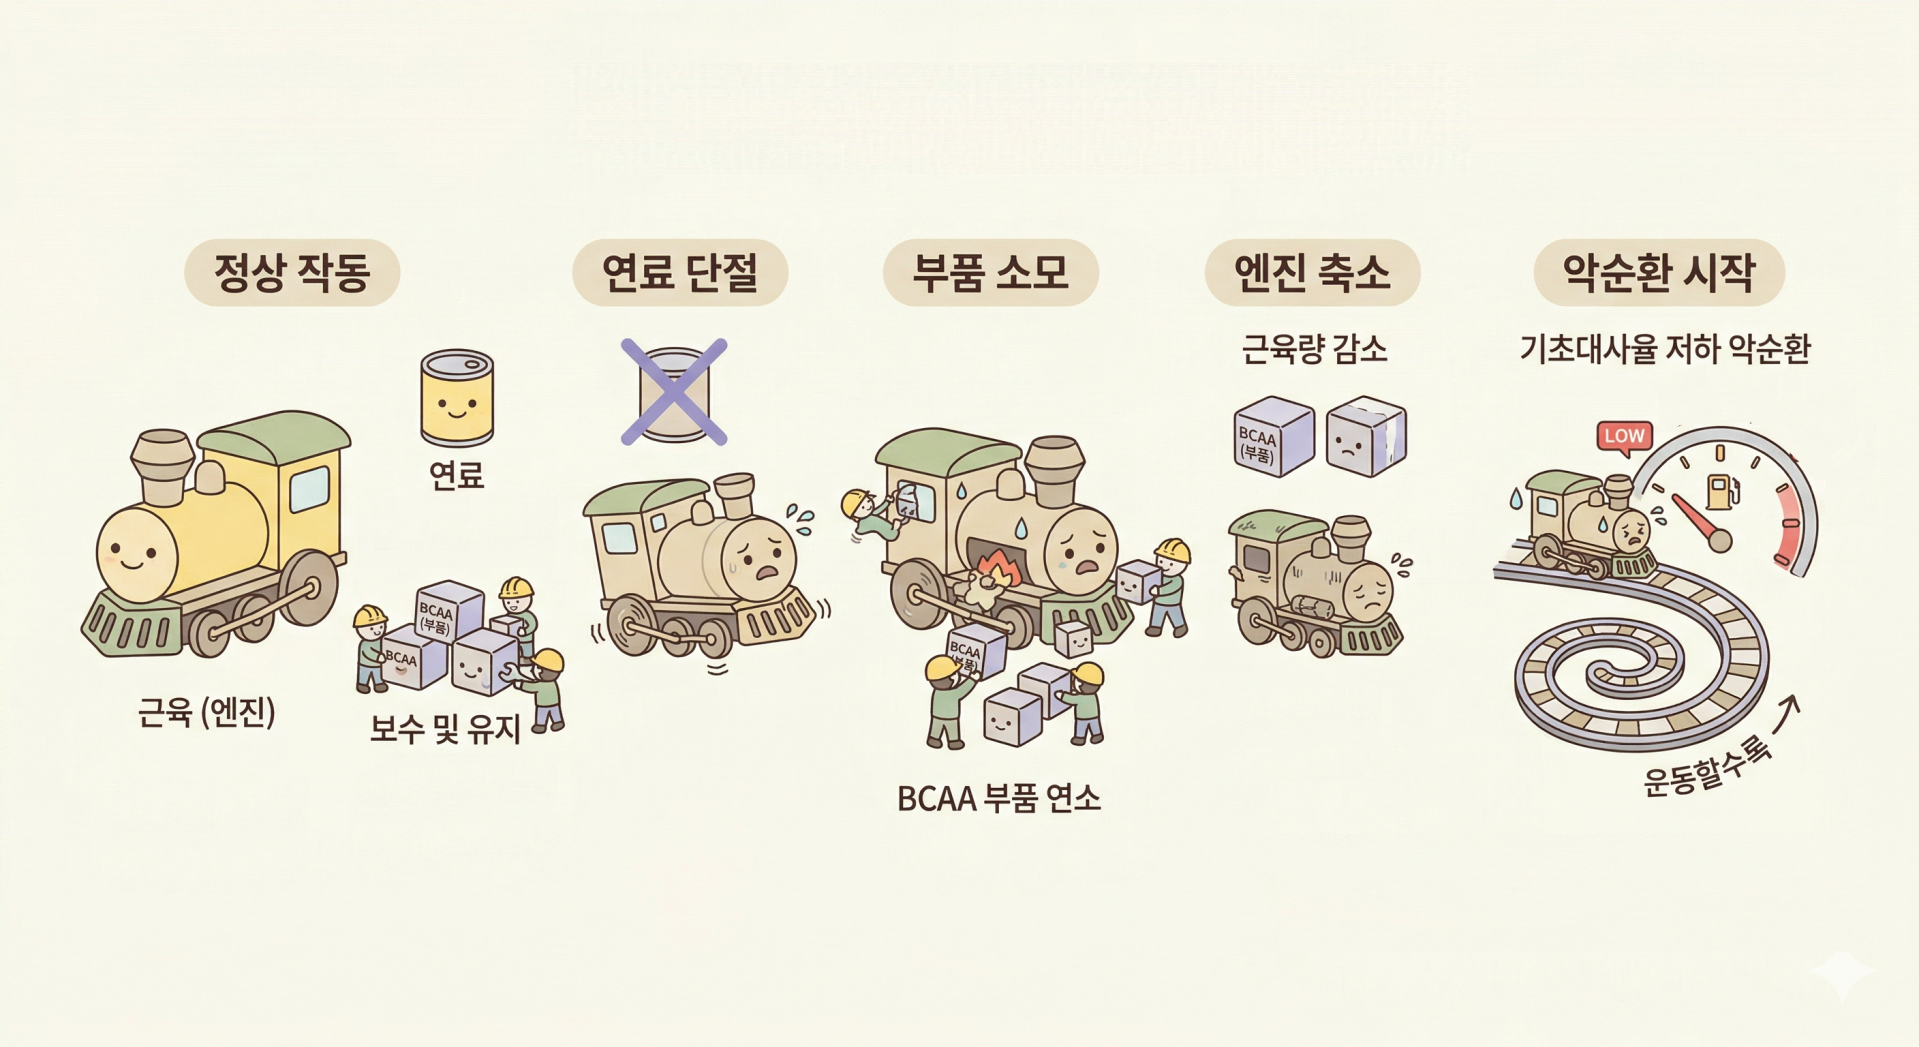
케톤 회로가 작동하지 않으면, 몸은 운동 중에 쓸 에너지를 어딘가에서 가져와야 합니다. 이때 동원되는 것이 근육 속 ‘BCAA(분지쇄 아미노산: 류신, 이소류신, 발린)’입니다. BCAA는 원래 근육 단백질 합성의 핵심 재료이지만, 에너지가 급할 때는 미토콘드리아의 ‘BCKDH(분지쇄 알파-케토산 탈수소효소) 복합체’에 의해 분해되어 아세틸-CoA나 숙시닐-CoA로 전환된 뒤 TCA 회로에 투입됩니다.
평소에 BCKDH 복합체는 인산화(비활성 상태)되어 있어 근육 단백질이 보호되지만, 운동 중에는 효소가 탈인산화(활성화)되면서 BCAA 산화가 급격히 증가합니다. 이 과정에서 이소류신과 발린의 분해 부산물인 분지쇄 알파-하이드록시 케토산(2-하이드록시이소발레르산 등)이 소변으로 배출됩니다. 따라서 소변 검사 시 이 지표의 상승은 근육에서 아미노산이 에너지원으로 '소진'되고 있다는 대사적 증거입니다.
엔진 비유를 이어가면, BCAA는 엔진 부품에 해당합니다. 정상적이라면 연료(지방)를 넣고 부품(BCAA)은 엔진(근육)을 유지·보수하는 데 쓰여야 하는데, 연료 공급이 끊긴 상태에서 엔진을 돌리려다 보니 부품 자체를 뜯어서 태우고 있는 셈입니다. 당연히 엔진은 점점 작아지고, 엔진이 작아지면 같은 거리를 가는 데 더 많은 연료가 필요해집니다. 결국 운동할수록 기초대사율이 낮아지는 악순환이 시작됩니다.
그리고 이 피로 뒤에는 폭발적 식욕이 따라옵니다. ‘영국 스포츠의학 저널(British Journal of Sports Medicine)’의 연구에서는 과체중·비만 여성 16명을 대상으로, 운동 중 탄수화물 산화량이 높을수록 운동 후 보상적 에너지 섭취가 증가한다는 것을 확인했습니다.
탄수화물 산화량은 운동 후 식사 열량 변이의 37%를 설명했으며, 연구진은 이를 '탄수화물 균형을 회복하려는 적응적 반응'으로 해석했습니다. 소규모 연구이므로 일반화에는 주의가 필요하지만, 지방 대신 탄수화물에 의존하는 대사 패턴이 운동 후 식욕 조절에 불리하게 작용할 수 있음을 시사하는 결과입니다.³
📋몸이 지방을 태우지 못하면 나타나는 몸속 3가지 도미노
| 도미노 단계 | 기전 | 느끼는 증상 |
| 1단계: 케톤 회로 비활성 | HMGCS2 억제 → BHB 생성 저하 → 지방 동원 실패 | 운동해도 체지방이 안 줄어듬 |
| 2단계: BCAA 비상 분해 | BCKDH 활성화 → 근육 아미노산 에너지 전환 → 근육량 감소 | 근육이 줄고 기초대사율 저하 |
| 3단계: TCA 회로 정체 | 아세틸-CoA 과부하 → 전자 전달 사슬 비효율 → ATP 생산 저하 | 극심한 피로, 운동 후 폭발적 식욕 |
이 세 가지 도미노를 하나의 문장으로 요약하면 이렇습니다. 케톤 스위치가 꺼진 몸은 지방을 건너뛰고 근육을 태우며, 에너지 공장마저 정체시켜 피로와 식욕의 늪에 빠뜨립니다.
그렇다면 이 도미노를 어디서부터 세워야, 운동이 진짜 체지방 감소로 이어질 수 있을까요?
✅ 케톤 스위치를 켜고, 근육을 지키는 3단계 전략
Step 1. 내 몸이 지방을 태우고 있는지, 근육을 태우고 있는지 점검
운동 루틴을 바꾸기 전에, 지금 내 몸이 어떤 연료에 기대고 있는지 가늠하는 것이 첫걸음입니다. 아래 항목 중 3개 이상 해당된다면, 케톤 대사 회로가 꺼져 있을 가능성이 높습니다.
📋케톤 대사 회로 상태를 가능하는 체크리스트
| 체크리스트 항목 | 의미하는 대사 신호 |
| 4~5시간 공복만으로 저혈당 유사 증상(손 떨림, 두통)이 나타난다 | 지방 → 케톤 전환이 안 되어, 포도당 고갈에 극도로 취약한 상태 |
| 운동 종료 30분 이내에 탄수화물 갈망이 통제하기 어려운 수준으로 올라온다 | 운동 중 탄수화물 의존도가 높아 혈당 급락 → 보상적 식욕 발동 |
| 주당 운동 시간을 2배로 늘렸음에도 4주 이상 체지방률 수치가 정체되어 있다 | 지방이 에너지원으로 동원되지 못하고 있다는 신호 |
| 같은 강도의 운동인데도 48시간 이상 근육통·피로가 이어진다 | TCA 회로 효율 저하로 ATP 생산이 운동 부하를 따라가지 못하는 상태 |
| 체중은 유지되지만 팔·허벅지 둘레가 줄고, 같은 무게가 예전보다 무겁게 느껴진다 | BCAA 비상 분해로 근육량이 감소하고 있을 가능성 |
단, 체크리스트는 방향을 잡는 출발점이지, 정밀한 진단은 아닙니다. 케톤 대사 활성도와 BCAA 분해 정도를 구분하려면 소변 유기산 검사(BHB, 3-HMG, 분지쇄 알파-케토산 등)를 통해 객관적 수치를 확인하는 것이 가장 정확합니다.
Step 2. 케톤 스위치를 켜는 식이·생활 습관 조정이 운동보다 먼저
케톤 대사 회로를 활성화하려면, 운동량을 늘리기 전에 인슐린을 낮추고 지방산 공급을 늘리는 대사 환경을 먼저 만들어야 합니다.
📋피해야 할 것 vs 권장하는 것
| 피해야 할 것 | 권장하는 것 | 이유 |
운동 직전 고탄수화물 간식
(바나나, 에너지바) | 운동 2~3시간 전 저탄수화물 식사 또는 12시간 이상 공복 후 가벼운 운동 | 인슐린 스파이크가 HMGCS2를 억제하여 케톤 생성을 차단합니다 |
| 하루 종일 간식을 통한 잦은 탄수화물 섭취 | 하루 2~3회 충분한 식사 + 식간 4~5시간 공복 유지 | 인슐린이 떨어지는 시간대를 확보해야 지방 동원 신호가 켜집니다 |
| 저지방 식단 + 과도한 정제 탄수화물 | 양질의 지방(올리브유, 아보카도, 견과류) + 식이섬유 풍부한 탄수화물 | 지방산 공급이 있어야 케톤 생성의 원료가 확보됩니다 |
| 매일 고강도 유산소 60분 이상 | 중강도 유산소 30~40분 + 주 2~3회 근력 운동 병행 | 과도한 유산소는 코르티솔을 높여 근육 분해를 촉진합니다 |
수면의 역할도 핵심입니다. 수면 중에는 인슐린이 자연스럽게 낮아지고, 간에서 케톤 생성이 활발해집니다. 수면 시간이 6시간 미만으로 줄면 인슐린 저항성이 증가하고 지방 산화 능력이 떨어지므로, 7~8시간의 수면은 케톤 스위치를 켜는 가장 기본적인 조건입니다.
식사 순서도 중요합니다. 같은 식단이라도 채소(식이섬유) → 단백질·지방 → 탄수화물 순서로 먹으면 혈당 급등을 완화하여, 식후 인슐린 과분비를 줄이고 지방 동원 가능 시간대를 앞당길 수 있습니다.
Step 3. 근육 손실 방어 회로 강화
케톤 스위치를 켜는 것과 동시에, 운동 중 BCAA 분해로 인한 근육 손실을 방어해야 합니다.
BCAA(특히 류신)는 mTOR 신호 경로를 활성화하여 근육 단백질 합성을 촉진하는 것으로 알려져 있지만, BCAA 단독 보충만으로는 충분하지 않습니다. 2017년 '국제스포츠영양학회 저널(Journal of the International Society of Sports Nutrition)'에 발표된 리뷰에 따르면, BCAA만 투여했을 때 근육 단백질 합성은 오히려 감소할 수 있으며, 이는 다른 필수 아미노산(EAA)이 함께 공급되지 않으면 합성에 필요한 재료가 부족해지기 때문입니다.⁴
따라서 핵심 전략은 식사를 통한 완전 단백질을 확보하고, 에너지 대사를 지탱하는 미네랄 환경을 구축해야 합니다.
① 식사 타이밍에 맞춘 양질의 단백질 확보
류신을 포함한 모든 필수 아미노산은 양질의 완전 단백질 식품으로 공급할 수 있습니다. 운동 전후 단백질 섭취 전략은 다음과 같습니다.
- 운동 1~2시간 전: 달걀 2~3개, 그릭 요거트 200g, 또는 두부 반 모 등 소화 부담이 적으면서 필수 아미노산이 풍부한 식품을 섭취합니다. 특히 달걀 1개에는 류신이 약 500mg 포함되어 있어, 3개면 보충제 수준의 류신을 식품으로 확보할 수 있습니다.
- 운동 직후 1시간 이내: 닭가슴살, 연어, 또는 콩·퀴노아 조합 등으로 단백질 20~30g을 식사로 섭취합니다. BCAA 단독 보충보다 완전 단백질을 통해 모든 필수 아미노산을 함께 공급하는 것이 근육 회복에 더 효과적입니다.
② TCA 회로의 연소 효율을 높이는 미네랄 보충
앞서 살펴본 것처럼, TCA 회로가 정체되면 운동 자극이 에너지로 변환되지 못하고 피로와 식욕 폭발로 이어집니다. 이 연소 공장이 원활하게 돌아가려면 효소 활성을 지원하는 미네랄이 반드시 갖춰져야 합니다.
- 마그네슘: TCA 회로 내 여러 효소(시트르산 합성효소, 이소시트르산 탈수소효소 등)의 보조 인자로, 에너지 생산 효율에 직접 관여합니다. 근육 경련, 수면 장애, 운동 후 회복 지연이 있다면 마그네슘 부족을 의심해 볼 수 있습니다.
- 아연: BCKDH 복합체의 조절뿐 아니라, 인슐린 신호 전달과 항산화 방어에도 관여하여 대사 유연성 유지에 중요한 역할을 합니다.
- 셀레늄: 항산화 효소(글루타치온 과산화효소)의 핵심 구성 성분으로, 미토콘드리아가 에너지를 만들 때 발생하는 활성 산소를 중화합니다.
이 세 가지 미네랄은 식단만으로 충분량을 확보하기 어려운 경우가 많으므로, 복합 미네랄 형태로 보충하는 것이 효율적입니다.
③ 케톤 스위치 가동 시간 늘리기
- 혈당 스파이크 예방: 식사 순서 전략과 함께 식후 혈당 급등을 완화하면 인슐린이 빨리 떨어지고 그만큼 케톤 대사 회로가 가동되는 시간대가 앞당겨집니다. 수용성 식이섬유(난소화성말토덱스트린 등)는 음식물의 소화 속도를 늦춰 식후 혈당 스파이크를 억제하고, 혈중 중성지질 개선에도 도움을 줍니다. 식사 전 식이섬유를 먼저 섭취하는 습관은, 별도의 식단 변경 없이도 인슐린 과분비를 줄이는 간편한 전략입니다.
- 근력 운동의 시너지 효과: 유산소 운동만으로는 케톤 대사 활성화의 효율이 제한적입니다. 근력 운동은 근육량을 유지·증가시켜 기초대사율을 높이고, BCAA가 에너지원으로 전용되는 비율을 줄여 줍니다. 주 2~3회 근력 운동(대근육군 중심: 스쿼트, 데드리프트, 벤치프레스)을 유산소와 병행하면, 근육 내 미토콘드리아 밀도가 증가하고 TCA 회로 효율이 개선되어 대사 유연성을 회복하는 데 기여합니다.²
❓ FAQ: 더 깊이 알아보기
Q1. 대사 유연성이 떨어져 있는지 스스로 확인할 수 있는 방법이 있나요?
A1. 간단한 자가 체크 포인트가 있습니다. 식사를 건너뛰었을 때 심한 두통·손 떨림·집중력 저하가 나타나거나, 운동 후 식욕이 통제 불능 수준으로 폭발하거나, 공복 상태에서 가벼운 산책조차 힘겹다면 대사 유연성 저하를 의심해 볼 수 있습니다. 그러나 자가 체크만으로는 케톤 대사와 BCAA 분해 상태를 구분하기 어렵기 때문에, 정확한 상태를 파악하려면 종합대사 기능 분석을 통해 유기산 지표를 객관적으로 확인하시는 것을 권합니다.
Q2. 여성은 남성보다 대사 유연성이 더 떨어지기 쉬운가요?
A2. 성별 자체가 대사 유연성을 결정하지는 않지만, 여성은 월경 주기에 따른 호르몬 변동, 에스트로겐 감소(폐경 전후), 다낭성 난소 증후군(PCOS) 등 대사 유연성에 영향을 미치는 고유한 요인이 있습니다. 특히 PCOS가 있는 여성에서는 공복 지방 산화가 낮고, 인슐린 자극 시 대사 전환이 약 47% 저하된다는 연구 결과가 보고되어 있습니다. 이 연구는 10~17세의 비만 소녀를 대상으로 한 것이지만, 인슐린 저항성에 의한 대사 유연성 저하 메커니즘은 연령대에 관계없이 적용될 수 있습니다.⁵
Q3. 공복 운동이 케톤 대사 활성화에 도움이 되나요?
A3. 공복 상태에서는 인슐린이 낮아 HMGCS2가 억제되지 않으므로, 케톤 생성이 촉진될 수 있습니다. 그러나 케톤 회로 자체가 이미 장기간 비활성 상태였다면, 공복 운동은 오히려 근육 BCAA만 더 소진시킬 위험이 있습니다. 따라서 공복 운동을 시작하기 전에 먼저 식이 조정(탄수화물 의존도를 낮추는 식단)으로 케톤 회로를 '예열'한 뒤, 가벼운 중강도 유산소부터 시작하는 것이 안전합니다.
[References]
¹ Maria Dolores Moya-Garzon, Mengjie Wang, Veronica L. Li, Xuchao Lyu, Wei Wei, Alan Sheng-Hwa Tung, Steffen H. Raun, Meng Zhao, Laetitia Coassolo, Hashim Islam, Barbara Oliveira, Yuqin Dai, Jan Spaas, Antonio Delgado-Gonzalez, Kenyi Donoso, Aurora Alvarez-Buylla, Francisco Franco-Montalban, Anudari Letian, Catherine P. Ward, Lichao Liu, Katrin J. Svensson, Emily L. Goldberg, Christopher D. Gardner, Jonathan P. Little, Steven M. Banik, Yong Xu, Jonathan Z. Long.(2024). “A β-hydroxybutyrate shunt pathway generates anti-obesity ketone metabolites.” Cell.
² Biff F. Palmer, Deborah J. Clegg.(2022). “Metabolic Flexibility and Its Impact on Health Outcomes.” Mayo Clinic Proceedings.
³ Mark Hopkins, John E. Blundell, Neil A. King.(2013). “Individual variability in compensatory eating following acute exercise in overweight and obese women.” British Journal of Sports Medicine.
⁴ Robert R. Wolfe.(2017). “Branched-chain amino acids and muscle protein synthesis in humans: myth or reality?” Journal of the International Society of Sports Nutrition.
⁵ Joon Young Kim, Hala Tfayli, Sara F. Michaliszyn, Silva Arslanian.(2017). “Impaired Lipolysis, Diminished Fat Oxidation, and Metabolic Inflexibility in Obese Girls With Polycystic Ovary Syndrome.” The Journal of Clinical Endocrinology & Metabolism.
⚠️바이오컴의 모든 콘텐츠는 웰니스 정보 제공만을 목적으로 합니다. 의학적 조언이나 진단, 치료를 대신할 수 없으며, 의학적 효능을 보장하지 않습니다. 기저질환이 있거나 건강상 우려가 있는 경우, 반드시 전문 의료진과 상의하시기 바랍니다.


몸이 지방을 연료로 읽지 못하면, 운동은 체지방이 아닌 근육을 깎는 도구가 됩니다. 열심히 뛰어도 빠지지 않는 살과 멈추지 않는 식욕, 그 답은 대사 회로 안에 있습니다.
📌 핵심 요약
🙋♂️운동 열심히 하는데, 왜 몸은 그대로일까요?
매일 아침 러닝머신 위에서 30분씩 뛰고, 주말마다 필라테스 수업을 듣고, 식단 앱에 칼로리를 기록합니다. 분명 6개월 전보다 운동량은 두 배로 늘었는데, 체중계 숫자는 요지부동이고 뱃살은 그대로입니다.
운동을 열심히 해도 눈에 띄는 변화를 느끼지 못한다면 운동 '방법'이 아니라, 몸이 에너지를 만드는 '회로' 자체에 문제가 있다는 것입니다.
우리 몸에는 두 가지 주요 연료 시스템이 있습니다. 하나는 탄수화물을 태우는 포도당 경로이고, 다른 하나는 지방을 케톤체로 바꿔 태우는 케톤 대사 경로입니다. 건강한 몸은 상황에 따라 이 두 경로를 자유롭게 오가는데, 이 능력을 ‘대사 유연성(Metabolic Flexibility)’이라 부릅니다.
대사 유연성이 높은 사람은 운동할 때 자연스럽게 지방을 꺼내 태울 수 있지만, 이 스위치가 굳어 버린 사람은 아무리 운동해도 몸이 포도당만 찾습니다. 그런데 포도당이 바닥나면 어떻게 될까요? 지방 대신 근육 속 아미노산을 분해해서 에너지를 만들어 냅니다.
그렇다면 이 '연료 스위치'는 왜 꺼지고, 꺼진 스위치는 몸속에서 어떤 도미노를 일으키는 걸까요?
🔍 몸이 지방을 태우지 못하면 무너지는 세 가지 도미노
운동해도 체지방이 줄지 않는 현상의 이면에는 세 가지 도미노가 연쇄적으로 작동하고 있습니다. 하나의 회로가 멈추면 다음 회로에 부하가 걸리고, 그 부하가 또 다른 회로를 무너뜨리는 구조입니다.
첫 번째 도미노, 케톤 대사 회로의 비활성화
우리 몸에 저장된 체지방은 그 자체로는 근육이 쓸 수 없습니다. 지방이 실제 연료가 되려면 간에서 ‘지방산→아세틸-CoA→HMG→CoA→BHB(베타-하이드록시부티르산)’ 순서로 전환되는 ‘케톤 생성 경로(Ketogenesis)’를 거쳐야 합니다. 이 과정에서 핵심 효소인 HMGCS2(3-하이드록시-3-메틸글루타릴-CoA 합성효소 2)가 비상 발전기의 시동 키 역할을 합니다. HMGCS2는 인슐린에 의해 억제되기 때문에, 혈당과 인슐린이 지속적으로 높은 상태에서는 시동 키가 잠긴 채로 유지됩니다.
비유하자면, 케톤 대사 경로는 ‘지방 창고의 비상 발전기’와 같습니다. 정상적이라면 포도당이 부족해질 때 자동으로 발전기가 가동되어 지방을 전기(에너지)로 바꿔야 합니다. 그런데 인슐린이라는 ‘안전 잠금장치’가 항상 걸려 있으면, 아무리 포도당이 바닥나도 발전기의 시동이 걸리지 않습니다.
BHB는 단순한 에너지원을 넘어 세포 신호 전달, 유전자 발현 조절, 항산화 방어에까지 관여하는 다기능 대사체입니다. 여기에 더해, 2024년 '셀(Cell)'에 발표된 논문에서는 BHB의 전혀 새로운 역할이 밝혀졌습니다. CNDP2라는 효소가 BHB와 유리 아미노산을 결합시켜 BHB-아미노산이라는 새로운 대사체 군을 만들어 내며, 그 중 가장 풍부한 HB-Phe(BHB-페닐알라닌)가 시상하부와 뇌간 뉴런을 활성화하여 식욕을 억제하는 기능을 갖고 있음이 비만 마우스 모델에서 확인되었습니다. 같은 연구에서 인간 혈장에서도 BHB-아미노산과 CNDP2 활성이 보존되어 있음이 검증되었지만, 식욕 억제 효과의 인간 임상 데이터는 아직 확보되지 않은 초기 연구 단계입니다.¹
그럼에도 이 발견이 시사하는 바는 분명합니다. 케톤 대사가 정상적으로 작동하면 지방을 태우면서 동시에 '배부름 신호'까지 보내는 경로가 열리지만, 이 회로가 꺼져 있으면 지방은 그대로이고 식욕 브레이크도 풀려 버릴 수 있다는 것입니다.
두 번째 도미노, 근손실의 악순환
케톤 회로가 작동하지 않으면, 몸은 운동 중에 쓸 에너지를 어딘가에서 가져와야 합니다. 이때 동원되는 것이 근육 속 ‘BCAA(분지쇄 아미노산: 류신, 이소류신, 발린)’입니다. BCAA는 원래 근육 단백질 합성의 핵심 재료이지만, 에너지가 급할 때는 미토콘드리아의 ‘BCKDH(분지쇄 알파-케토산 탈수소효소) 복합체’에 의해 분해되어 아세틸-CoA나 숙시닐-CoA로 전환된 뒤 TCA 회로에 투입됩니다.
평소에 BCKDH 복합체는 인산화(비활성 상태)되어 있어 근육 단백질이 보호되지만, 운동 중에는 효소가 탈인산화(활성화)되면서 BCAA 산화가 급격히 증가합니다. 이 과정에서 이소류신과 발린의 분해 부산물인 분지쇄 알파-하이드록시 케토산(2-하이드록시이소발레르산 등)이 소변으로 배출됩니다. 따라서 소변 검사 시 이 지표의 상승은 근육에서 아미노산이 에너지원으로 '소진'되고 있다는 대사적 증거입니다.
엔진 비유를 이어가면, BCAA는 엔진 부품에 해당합니다. 정상적이라면 연료(지방)를 넣고 부품(BCAA)은 엔진(근육)을 유지·보수하는 데 쓰여야 하는데, 연료 공급이 끊긴 상태에서 엔진을 돌리려다 보니 부품 자체를 뜯어서 태우고 있는 셈입니다. 당연히 엔진은 점점 작아지고, 엔진이 작아지면 같은 거리를 가는 데 더 많은 연료가 필요해집니다. 결국 운동할수록 기초대사율이 낮아지는 악순환이 시작됩니다.
그리고 이 피로 뒤에는 폭발적 식욕이 따라옵니다. ‘영국 스포츠의학 저널(British Journal of Sports Medicine)’의 연구에서는 과체중·비만 여성 16명을 대상으로, 운동 중 탄수화물 산화량이 높을수록 운동 후 보상적 에너지 섭취가 증가한다는 것을 확인했습니다.
탄수화물 산화량은 운동 후 식사 열량 변이의 37%를 설명했으며, 연구진은 이를 '탄수화물 균형을 회복하려는 적응적 반응'으로 해석했습니다. 소규모 연구이므로 일반화에는 주의가 필요하지만, 지방 대신 탄수화물에 의존하는 대사 패턴이 운동 후 식욕 조절에 불리하게 작용할 수 있음을 시사하는 결과입니다.³
📋몸이 지방을 태우지 못하면 나타나는 몸속 3가지 도미노
이 세 가지 도미노를 하나의 문장으로 요약하면 이렇습니다. 케톤 스위치가 꺼진 몸은 지방을 건너뛰고 근육을 태우며, 에너지 공장마저 정체시켜 피로와 식욕의 늪에 빠뜨립니다.
그렇다면 이 도미노를 어디서부터 세워야, 운동이 진짜 체지방 감소로 이어질 수 있을까요?
✅ 케톤 스위치를 켜고, 근육을 지키는 3단계 전략
Step 1. 내 몸이 지방을 태우고 있는지, 근육을 태우고 있는지 점검
운동 루틴을 바꾸기 전에, 지금 내 몸이 어떤 연료에 기대고 있는지 가늠하는 것이 첫걸음입니다. 아래 항목 중 3개 이상 해당된다면, 케톤 대사 회로가 꺼져 있을 가능성이 높습니다.
📋케톤 대사 회로 상태를 가능하는 체크리스트
단, 체크리스트는 방향을 잡는 출발점이지, 정밀한 진단은 아닙니다. 케톤 대사 활성도와 BCAA 분해 정도를 구분하려면 소변 유기산 검사(BHB, 3-HMG, 분지쇄 알파-케토산 등)를 통해 객관적 수치를 확인하는 것이 가장 정확합니다.
Step 2. 케톤 스위치를 켜는 식이·생활 습관 조정이 운동보다 먼저
케톤 대사 회로를 활성화하려면, 운동량을 늘리기 전에 인슐린을 낮추고 지방산 공급을 늘리는 대사 환경을 먼저 만들어야 합니다.
📋피해야 할 것 vs 권장하는 것
(바나나, 에너지바)
수면의 역할도 핵심입니다. 수면 중에는 인슐린이 자연스럽게 낮아지고, 간에서 케톤 생성이 활발해집니다. 수면 시간이 6시간 미만으로 줄면 인슐린 저항성이 증가하고 지방 산화 능력이 떨어지므로, 7~8시간의 수면은 케톤 스위치를 켜는 가장 기본적인 조건입니다.
식사 순서도 중요합니다. 같은 식단이라도 채소(식이섬유) → 단백질·지방 → 탄수화물 순서로 먹으면 혈당 급등을 완화하여, 식후 인슐린 과분비를 줄이고 지방 동원 가능 시간대를 앞당길 수 있습니다.
Step 3. 근육 손실 방어 회로 강화
케톤 스위치를 켜는 것과 동시에, 운동 중 BCAA 분해로 인한 근육 손실을 방어해야 합니다.
BCAA(특히 류신)는 mTOR 신호 경로를 활성화하여 근육 단백질 합성을 촉진하는 것으로 알려져 있지만, BCAA 단독 보충만으로는 충분하지 않습니다. 2017년 '국제스포츠영양학회 저널(Journal of the International Society of Sports Nutrition)'에 발표된 리뷰에 따르면, BCAA만 투여했을 때 근육 단백질 합성은 오히려 감소할 수 있으며, 이는 다른 필수 아미노산(EAA)이 함께 공급되지 않으면 합성에 필요한 재료가 부족해지기 때문입니다.⁴
따라서 핵심 전략은 식사를 통한 완전 단백질을 확보하고, 에너지 대사를 지탱하는 미네랄 환경을 구축해야 합니다.
① 식사 타이밍에 맞춘 양질의 단백질 확보
류신을 포함한 모든 필수 아미노산은 양질의 완전 단백질 식품으로 공급할 수 있습니다. 운동 전후 단백질 섭취 전략은 다음과 같습니다.
② TCA 회로의 연소 효율을 높이는 미네랄 보충
앞서 살펴본 것처럼, TCA 회로가 정체되면 운동 자극이 에너지로 변환되지 못하고 피로와 식욕 폭발로 이어집니다. 이 연소 공장이 원활하게 돌아가려면 효소 활성을 지원하는 미네랄이 반드시 갖춰져야 합니다.
이 세 가지 미네랄은 식단만으로 충분량을 확보하기 어려운 경우가 많으므로, 복합 미네랄 형태로 보충하는 것이 효율적입니다.
③ 케톤 스위치 가동 시간 늘리기
❓ FAQ: 더 깊이 알아보기
Q1. 대사 유연성이 떨어져 있는지 스스로 확인할 수 있는 방법이 있나요?
A1. 간단한 자가 체크 포인트가 있습니다. 식사를 건너뛰었을 때 심한 두통·손 떨림·집중력 저하가 나타나거나, 운동 후 식욕이 통제 불능 수준으로 폭발하거나, 공복 상태에서 가벼운 산책조차 힘겹다면 대사 유연성 저하를 의심해 볼 수 있습니다. 그러나 자가 체크만으로는 케톤 대사와 BCAA 분해 상태를 구분하기 어렵기 때문에, 정확한 상태를 파악하려면 종합대사 기능 분석을 통해 유기산 지표를 객관적으로 확인하시는 것을 권합니다.
Q2. 여성은 남성보다 대사 유연성이 더 떨어지기 쉬운가요?
A2. 성별 자체가 대사 유연성을 결정하지는 않지만, 여성은 월경 주기에 따른 호르몬 변동, 에스트로겐 감소(폐경 전후), 다낭성 난소 증후군(PCOS) 등 대사 유연성에 영향을 미치는 고유한 요인이 있습니다. 특히 PCOS가 있는 여성에서는 공복 지방 산화가 낮고, 인슐린 자극 시 대사 전환이 약 47% 저하된다는 연구 결과가 보고되어 있습니다. 이 연구는 10~17세의 비만 소녀를 대상으로 한 것이지만, 인슐린 저항성에 의한 대사 유연성 저하 메커니즘은 연령대에 관계없이 적용될 수 있습니다.⁵
Q3. 공복 운동이 케톤 대사 활성화에 도움이 되나요?
A3. 공복 상태에서는 인슐린이 낮아 HMGCS2가 억제되지 않으므로, 케톤 생성이 촉진될 수 있습니다. 그러나 케톤 회로 자체가 이미 장기간 비활성 상태였다면, 공복 운동은 오히려 근육 BCAA만 더 소진시킬 위험이 있습니다. 따라서 공복 운동을 시작하기 전에 먼저 식이 조정(탄수화물 의존도를 낮추는 식단)으로 케톤 회로를 '예열'한 뒤, 가벼운 중강도 유산소부터 시작하는 것이 안전합니다.
[References]
¹ Maria Dolores Moya-Garzon, Mengjie Wang, Veronica L. Li, Xuchao Lyu, Wei Wei, Alan Sheng-Hwa Tung, Steffen H. Raun, Meng Zhao, Laetitia Coassolo, Hashim Islam, Barbara Oliveira, Yuqin Dai, Jan Spaas, Antonio Delgado-Gonzalez, Kenyi Donoso, Aurora Alvarez-Buylla, Francisco Franco-Montalban, Anudari Letian, Catherine P. Ward, Lichao Liu, Katrin J. Svensson, Emily L. Goldberg, Christopher D. Gardner, Jonathan P. Little, Steven M. Banik, Yong Xu, Jonathan Z. Long.(2024). “A β-hydroxybutyrate shunt pathway generates anti-obesity ketone metabolites.” Cell.
² Biff F. Palmer, Deborah J. Clegg.(2022). “Metabolic Flexibility and Its Impact on Health Outcomes.” Mayo Clinic Proceedings.
³ Mark Hopkins, John E. Blundell, Neil A. King.(2013). “Individual variability in compensatory eating following acute exercise in overweight and obese women.” British Journal of Sports Medicine.
⁴ Robert R. Wolfe.(2017). “Branched-chain amino acids and muscle protein synthesis in humans: myth or reality?” Journal of the International Society of Sports Nutrition.
⁵ Joon Young Kim, Hala Tfayli, Sara F. Michaliszyn, Silva Arslanian.(2017). “Impaired Lipolysis, Diminished Fat Oxidation, and Metabolic Inflexibility in Obese Girls With Polycystic Ovary Syndrome.” The Journal of Clinical Endocrinology & Metabolism.
⚠️바이오컴의 모든 콘텐츠는 웰니스 정보 제공만을 목적으로 합니다. 의학적 조언이나 진단, 치료를 대신할 수 없으며, 의학적 효능을 보장하지 않습니다. 기저질환이 있거나 건강상 우려가 있는 경우, 반드시 전문 의료진과 상의하시기 바랍니다.